Pengenalan
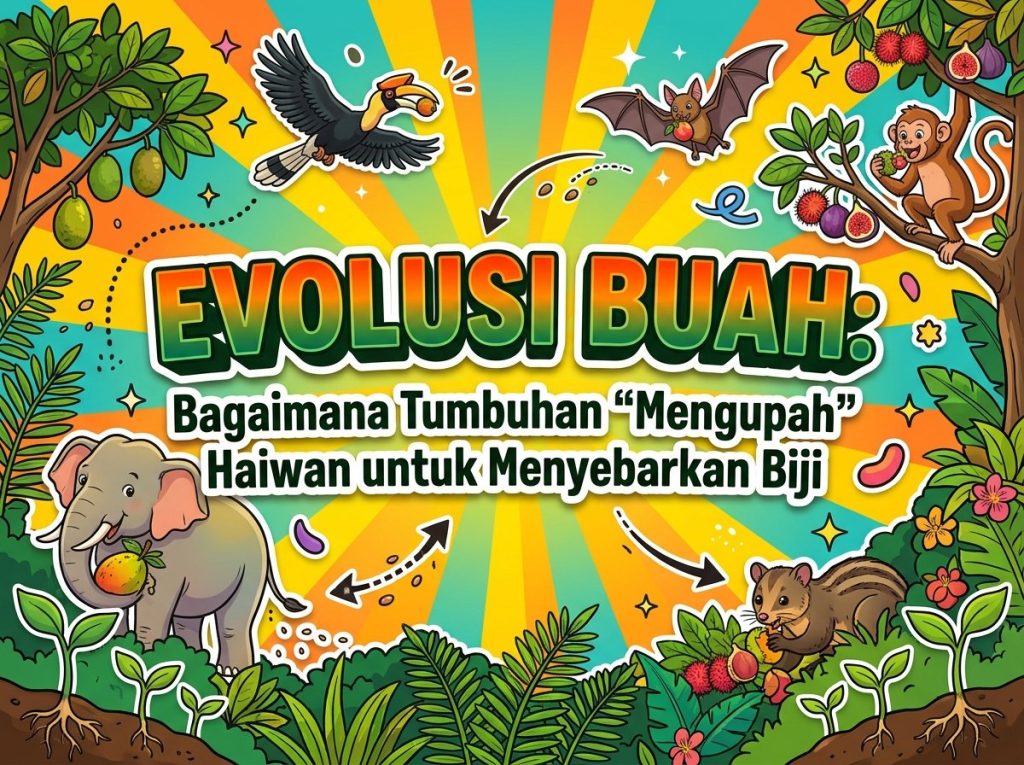
Tumbuhan tidak boleh bergerak, tetapi bijinya perlu sampai ke tempat baharu untuk tumbuh jauh daripada pokok induk. Banyak tumbuhan menyelesaikan masalah ini dengan “mengupah” haiwan: buah yang berwarna, berbau dan berkhasiat ditawarkan sebagai ganjaran, dan haiwan yang memakannya membawa biji ke tempat lain. Di hutan Malaysia, burung enggang, kelawar buah, monyet dan orang utan memainkan peranan ini (pengetahuan am). Memahami hubungan ini penting bagi pemuliharaan hutan, pemulihan habitat dan sumber genetik tanaman buah.
Artikel ini meringkaskan kajian bertajuk “Dispersers shape fruit diversity in Ficus (Moraceae)” (Lomáscolo et al., 2010). Objektifnya ialah menguji sama ada sifat buah ara (Ficus) berevolusi bersama mengikut perbezaan tingkah laku, fisiologi dan morfologi haiwan penyebar bijinya, menggunakan ujian perbandingan filogenetik multivariat ke atas bau dan warna buah. Negara atau tapak kajian tidak dinyatakan dalam abstrak. Kajian sokongan terdiri daripada ulasan sejarah evolusi buah (Eriksson, 2016), kajian kecerunan altitud di Papua New Guinea (Hazell et al., 2025), kajian jisim biji (Bolmgren dan Eriksson, 2010) dan bab buku tentang pemakanan buah (Corlett, 2021).
Sorotan Kajian Lepas
Abstrak kajian utama menyatakan bahawa penyebaran biji oleh vertebrata ialah antara bentuk mutualisme tumbuhan-haiwan yang paling biasa dan penting. Walaupun begitu, ahli ekologi evolusi sebelum ini sukar mengaitkan gabungan sifat buah dengan perbezaan haiwan pemakan buah, menyebabkan asal usul kepelbagaian buah sebahagian besarnya tidak dapat dijelaskan.
Dari segi ekologi, Nathan dan Muller-Landau (2000) mengulas corak ruang penyebaran biji, penentunya dan kesannya terhadap penubuhan anak pokok, serta menekankan peranan model matematik dalam memahami proses penyebaran secara lebih mekanistik. Fenner (2000) menyunting buku tentang ekologi biji dan penjanaan semula komuniti tumbuhan, yang merangkumi bab tentang penyebaran biji, haiwan sebagai penyebar biji serta buah dan pemakanan buah.
Kajian utama juga bergantung kepada kaedah perbandingan filogenetik. Felsenstein (1985) mencadangkan kaedah membetulkan kesan filogeni melalui set kontras antara spesies yang bebas secara statistik untuk digunakan dalam analisis regresi atau korelasi. Posada dan Crandall (1998) membangunkan program MODELTEST untuk memilih model evolusi DNA yang paling sesuai, manakala Maddison dan Maddison (2009) membangunkan Mesquite, sistem modular untuk analisis evolusi.
Dapatan Utama
Sifat buah berevolusi mengikut haiwan penyebar. Lomáscolo et al. (2010) menggunakan anggaran bau dan warna buah ara yang tidak berat sebelah, dan mendapati sifat buah berevolusi secara bersepadu seperti yang diramalkan oleh perbezaan tingkah laku, fisiologi (keupayaan deria) dan morfologi haiwan penyebar biji.
Buah serupa untuk penyebar yang sama. Evolusi sifat yang berkorelasi menyebabkan rupa umum buah menjadi serupa (penumpuan) dalam spesies yang berkongsi jenis penyebar. Pemerhatian di pokok berbuah secara bebas mengesahkan bahawa perbezaan sifat ara meramalkan perbezaan haiwan penyebar. Penulis menyimpulkan bahawa perbezaan antara pemakan buah telah membentuk evolusi sifat buah, dan mutualisme penting dalam menjana serta mengekalkan biodiversiti.
Garis masa evolusi. Eriksson (2016) merumuskan bahawa kepelbagaian saiz biji dan buah berisi angiosperma bermula sekitar 80 juta tahun dahulu, dan kepelbagaian saiz biji, saiz buah dan jenis buah memuncak pada zaman Eosen, sekitar 55 hingga 50 juta tahun dahulu. Multituberkulat yang telah pupus mungkin pemakan buah terpenting pada fasa awal, manakala primat dan rodensia mungkin penting pada bahagian akhir fasa tersebut. Burung dan kelawar pemakan buah berevolusi pada fasa kedua.
Altitud mempengaruhi sifat buah. Hazell et al. (2025) mengkaji kecerunan hutan hujan 200 – 2700 m dari aras laut di Papua New Guinea. Diameter buah lebih kecil di altitud tinggi, warna yang biasanya dikaitkan dengan burung lebih kerap di altitud tinggi, dan perkadaran spesies yang berbuah pada dahan (ramiflori) meningkat dengan altitud. Buah berwarna “mamalia” lebih besar berbanding buah berwarna “burung”, dan terdapat bukti evolusi berkorelasi antara saiz dan warna buah, menyokong hipotesis sindrom penyebaran.
Buah berisi dan biji lebih berat. Bolmgren dan Eriksson (2010) membandingkan klad bersaudara dan mendapati hubungan konsisten antara buah berisi dengan biji yang lebih berat, tanpa mengira arah perubahan jenis buah.
Tumbuhan “memilih” pemakan buah. Corlett (2021) menyatakan buah mudah dimakan tetapi rendah kepekatan nutrien, jadi pemakan buah pakar memerlukan penyesuaian khusus. Tumbuhan boleh “memilih” pemakan buah dengan mengembangkan sifat fizikal dan kimia yang sepadan, tetapi bukti koevolusi timbal balik adalah sedikit. Vertebrata besar yang memakan buah lebih besar dan menyebarkan biji lebih jauh paling terdedah kepada pemburuan dan kemusnahan habitat.
Contoh tempatan. Di Sabah, Nakashima et al. (2008) mendapati Durio graveolens disebarkan oleh enggang hitam manakala D. zibethinus disebarkan oleh kera ekor panjang.
| Aspek | Dapatan | Sumber |
|---|---|---|
| Sifat buah ara diuji | Bau dan warna | Lomáscolo et al. (2010) |
| Permulaan kepelbagaian buah berisi | Sekitar 80 juta tahun dahulu | Eriksson (2016) |
| Puncak kepelbagaian | Eosen, 55–50 juta tahun dahulu | Eriksson (2016) |
| Kecerunan altitud dikaji | 200 – 2700 m | Hazell et al. (2025) |
| Buah berisi dan jisim biji | Biji lebih berat | Bolmgren dan Eriksson (2010) |
Perbincangan
Secara keseluruhan, bukti menunjukkan bahawa sebahagian sifat “upah” yang ditawarkan tumbuhan, seperti warna, bau dan saiz buah, telah dibentuk oleh haiwan yang menyebarkan biji. Kajian ara memberi bukti filogenetik dan lapangan yang selari, dan kajian Papua New Guinea menyokong idea sindrom penyebaran: buah untuk burung dan buah untuk mamalia berbeza dari segi warna dan saiz. Bagaimanapun, Corlett (2021) mengingatkan bahawa walaupun tumbuhan boleh mengembangkan sifat yang sepadan dengan ciri pemakan buah, bukti koevolusi timbal balik adalah sedikit. Bolmgren dan Eriksson (2010) pula mengakui bahawa data mereka belum dapat membezakan antara dua hipotesis yang bersaing.
Had kajian perlu diambil kira. Abstrak kajian utama tidak melaporkan nilai kuantitatif atau tapak kajian, dan kajian Hazell et al. (2025) masih berstatus pracetak. Tiada kajian khusus dari Semenanjung Malaysia dalam carian ini.
Bagi Malaysia, implikasi paling penting ialah pemuliharaan. Corlett (2021) menyatakan pergantungan penyebaran biji kepada vertebrata menjadikannya terdedah kepada pemburuan dan kemusnahan habitat, dan kehilangan haiwan besar mengurangkan keupayaan populasi tumbuhan bertindak balas terhadap perubahan iklim. Ini relevan kepada spesies buah liar, termasuk saudara liar tanaman buah tempatan.
Implikasi kepada Agensi dan Pengusaha
1. Lindungi koridor hutan dan haiwan penyebar biji seperti enggang dan kera, kerana banyak pokok buah liar bergantung kepada mereka untuk penyebaran biji.
2. Dalam pemulihan habitat, pilih spesies pokok buah yang menarik pelbagai jenis pemakan buah, seperti ara (pengetahuan am).
3. Gunakan konsep sindrom penyebaran dalam pendidikan untuk menerangkan kepelbagaian warna dan saiz buah.
4. Ambil kira kesan pemburuan terhadap penjanaan semula hutan.
5. Galakkan kajian tempatan tentang interaksi buah dan haiwan di hutan Semenanjung Malaysia.
Kesimpulan
Buah berisi boleh difahami sebagai “upah” kepada haiwan penyebar biji. Kajian ara menunjukkan bahawa bau dan warna buah berevolusi mengikut ciri haiwan penyebar, dan kajian lain menyokong hubungan antara warna, saiz buah dan jenis penyebar. Kepelbagaian buah berisi bermula sekitar 80 juta tahun dahulu. Kehilangan haiwan penyebar mengancam proses ini.
Rujukan
1. Lomáscolo, S. B., Levey, D. J., Kimball, R. T., et al. (2010). Dispersers shape fruit diversity in Ficus (Moraceae). Proceedings of the National Academy of Sciences of the United States of America. https://doi.org/10.1073/pnas.1008773107
2. Eriksson, O. (2016). Evolution of angiosperm seed disperser mutualisms: the timing of origins and their consequences for coevolutionary interactions between angiosperms and frugivores. Biological Reviews. https://doi.org/10.1111/brv.12164
3. Hazell, R. J., Kaina, G., Sam, K., et al. (2025). Fruit traits reflect adaptation to dispersers along a tropical elevational gradient. Pracetak. https://doi.org/10.22541/au.175697755.52347980/v1
4. Bolmgren, K., & Eriksson, O. (2010). Seed mass and the evolution of fleshy fruits in angiosperms. Oikos. https://doi.org/10.1111/j.1600-0706.2009.17944.x
5. Corlett, R. T. (2021). Frugivory and seed dispersal. Bab buku. https://doi.org/10.1007/978-3-030-66877-8_7
6. Nakashima, Y., Lagan, P., & Kitayama, K. (2008). A study of fruit–frugivore interactions in two species of durian (Durio, Bombacaceae) in Sabah, Malaysia. Biotropica. https://doi.org/10.1111/j.1744-7429.2007.00335.x
7. Nathan, R., & Muller-Landau, H. C. (2000). Spatial patterns of seed dispersal, their determinants and consequences for recruitment. Trends in Ecology and Evolution. https://doi.org/10.1016/S0169-5347(00)01874-7
8. Fenner, M. (Ed.). (2000). Seeds: the ecology of regeneration in plant communities.
9. Felsenstein, J. (1985). Phylogenies and the comparative method. The American Naturalist. https://doi.org/10.1086/284325
10. Posada, D., & Crandall, K. A. (1998). MODELTEST: testing the model of DNA substitution. Bioinformatics. https://doi.org/10.1093/bioinformatics/14.9.817
11. Maddison, W. P., & Maddison, D. R. (2009). Mesquite: a modular system for evolutionary analysis. Version 2.6.
Sumber carian: SciSpace Literature Review (mod High Quality), November 2026.
Kata kunci: evolusi buah, penyebaran biji, pemakan buah, mutualisme, sindrom penyebaran, Ficus, warna buah, saiz biji